علوم اعصاب پروس؛ اختلالاتی که بر پایانه پیش سیناپسی تأثیر میگذارند
دعای مطالعه [ نمایش ]
بِسْمِ الله الرَّحْمنِ الرَّحیمِ
اَللّهُمَّ اَخْرِجْنى مِنْ ظُلُماتِ الْوَهْمِ
خدايا مرا بيرون آور از تاريكىهاى وهم،
وَ اَكْرِمْنى بِنُورِ الْفَهْمِ
و به نور فهم گرامى ام بدار،
اَللّهُمَّ افْتَحْ عَلَيْنا اَبْوابَ رَحْمَتِكَ
خدايا درهاى رحمتت را به روى ما بگشا،
وَانْشُرْ عَلَيْنا خَزائِنَ عُلُومِكَ بِرَحْمَتِكَ يا اَرْحَمَ الرّاحِمينَ
و خزانههاى علومت را بر ما باز كن به امید رحمتت اى مهربانترين مهربانان.
آیندهنگاران مغز: «ما مغز را میشناسیم، تا آینده را بسازیم.»
کتاب «علوم اعصاب» اثر پروس و همکاران بهعنوان یکی از جامعترین و معتبرترین منابع در حوزه علوم اعصاب، همچنان مرجع کلیدی برای درک پیچیدگیهای مغز و سیستم عصبی است. این اثر با بهرهگیری از تازهترین پژوهشها و توضیحات دقیق درباره سازوکارهای عصبی، پلی میان دانش پایه علوم اعصاب و کاربردهای بالینی ایجاد میکند و نقشی بیبدیل در آموزش، پژوهش و ارتقای دانش مغز و اعصاب ایفا مینماید.
ترجمه دقیق و علمی این شاهکار توسط برند علمی «آیندهنگاران مغز» به مدیریت داریوش طاهری، دسترسی فارسیزبانان به مرزهای نوین دانش علوم اعصاب را ممکن ساخته و رسالتی علمی برای ارتقای آموزش، فهم عمیقتر عملکرد مغز و سیستم عصبی و توسعه روشهای نوین در حوزه سلامت عصبی فراهم آورده است.
» کتاب علوم اعصاب پروس
» » فصل ۵: انتقال سیناپسی؛ قسمت پنجم
» Neuroscience; Dale Purves, et al.
»» Chapter 5: Synaptic Transmission
در حال ویرایش
CLINICAL APPLICATIONS
Disorders That Affect the Presynaptic Terminal
Defects in various steps in the exocytosis and endocytosis of synaptic vesicles have been shown to be at the root of several rare but debilitating neurological diseases.
کاربردهای بالینی
اختلالاتی که بر پایانه پیش سیناپسی تأثیر میگذارند
نقص در مراحل مختلف اگزوسیتوز و اندوسیتوز وزیکولهای سیناپسی، ریشه چندین بیماری عصبی نادر اما ناتوانکننده است.
Myasthenic syndromes
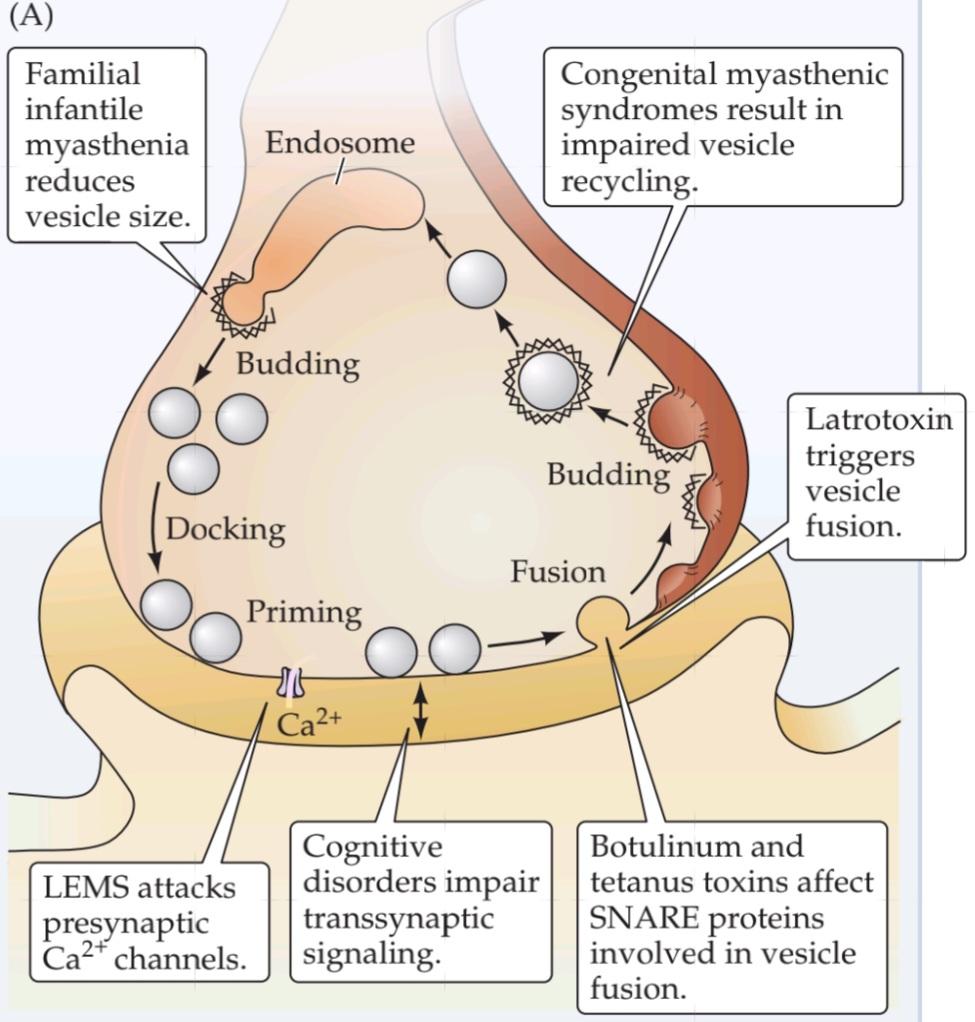
In myasthenic syndromes, abnormal transmission at neuromuscular synapses leads to weakness and fatigability of skeletal muscles. Some of these syndromes affect the acetylcholinesterase that degrades acetylcholine in the synaptic cleft; others arise from autoimmune attack of acetylcholine receptors (see Clinical Applications, Chapter 6); and yet others affect acetylcholine release from motor neurons. One of the best understood myasthenic syndromes is Lambert-Eaton myasthenic syndrome, or LEMS, an occasional complication in patients with certain kinds of cancers. Biopsies of muscle tissue removed from LEMS patients allow intracellular recordings identical to those in Figure 5.5. These recordings from affected tissues show that when a motor neuron is stimulated, the number of quanta contained in EPPs is greatly reduced while the size of individual quanta is unaffected. Several lines of evidence indicate that this reduc-tion in neurotransmitter release is due to a loss of voltage-gated Ca2+ channels in the presynaptic terminal of motor neurons (see Figure A); perhaps most compelling are anatomical studies that reveal a lowered density of Ca2+ channels in the presynaptic plasma membrane.
سندرمهای میاستنی
در سندرمهای میاستنی، انتقال غیرطبیعی در سیناپسهای عصبی-عضلانی منجر به ضعف و خستگی عضلات اسکلتی میشود. برخی از این سندرمها بر استیل کولین استراز که استیل کولین را در شکاف سیناپسی تجزیه میکند، تأثیر میگذارند. برخی دیگر از حمله خودایمنی گیرندههای استیل کولین ناشی میشوند (به کاربردهای بالینی، فصل 6 مراجعه کنید)؛ و برخی دیگر بر آزادسازی استیل کولین از نورونهای حرکتی تأثیر میگذارند. یکی از شناختهشدهترین سندرمهای میاستنی، سندرم میاستنی لامبرت-ایتون یا LEMS است که عارضهای گاه به گاه در بیماران مبتلا به انواع خاصی از سرطان است. بیوپسیهای بافت عضلانی برداشته شده از بیماران LEMS امکان ثبتهای درون سلولی مشابه با موارد موجود در شکل 5.5 را فراهم میکند. این ثبتها از بافتهای آسیبدیده نشان میدهند که وقتی یک نورون حرکتی تحریک میشود، تعداد کوانتومهای موجود در EPPها به میزان زیادی کاهش مییابد در حالی که اندازه کوانتومهای منفرد تحت تأثیر قرار نمیگیرد. شواهد متعددی نشان میدهند که این کاهش در آزادسازی انتقالدهندههای عصبی به دلیل از بین رفتن کانالهای +Ca2 وابسته به ولتاژ در پایانه پیشسیناپسی نورونهای حرکتی است (شکل A را ببینید)؛ شاید قانعکنندهترین آنها مطالعات آناتومیکی باشند که تراکم کمتر کانالهای +Ca2 را در غشای پلاسمایی پیشسیناپسی نشان میدهند.
The loss of presynaptic Ca2+ channels in LEMS patients apparently arises from an autoimmune disorder. Their blood has a very high concentration of antibodies that bind to Ca2+ channels, and it seems likely that these antibodies are the primary cause of LEMS. For example, removal of Ca2+ channel antibodies from the blood of LEMS patients by plasma exchange reduces muscle weakness. Similarly, immunosuppressant drugs also can alleviate LEMS symptoms. Perhaps most telling, injecting these antibodies into experimental animals elicits muscle weakness and abnormal neuromuscular transmission.
ظاهراً از بین رفتن کانالهای پیشسیناپسی +Ca2 در بیماران LEMS ناشی از یک اختلال خودایمنی است. خون آنها غلظت بسیار بالایی از آنتیبادیهایی دارد که به کانالهای +Ca2 متصل میشوند و به نظر میرسد که این آنتیبادیها علت اصلی LEMS هستند. به عنوان مثال، حذف آنتیبادیهای کانال +Ca2 از خون بیماران LEMS با تعویض پلاسما، ضعف عضلانی را کاهش میدهد. به طور مشابه، داروهای سرکوبکننده سیستم ایمنی نیز میتوانند علائم LEMS را کاهش دهند. شاید گویاترین نکته، تزریق این آنتیبادیها به حیوانات آزمایشگاهی باشد که باعث ضعف عضلانی و انتقال عصبی-عضلانی غیرطبیعی میشود.
Why the immune system generates antibodies against Ca2+ channels is not clear. Most LEMS patients have small-cell carcinoma, a form of lung cancer that may somehow initiate the immune response to Ca2+ channels. Whatever the origin, the binding of antibodies to Ca2+ channels reduces the ability of these channels to carry Ca2+ current. It is this antibody-induced defect in presynaptic Ca2+ entry that accounts for the muscle weakness associated with LEMS.
اینکه چرا سیستم ایمنی آنتیبادیهایی علیه کانالهای +Ca2 تولید میکند، مشخص نیست. اکثر بیماران LEMS مبتلا به کارسینوم سلول کوچک هستند، نوعی سرطان ریه که ممکن است به نحوی پاسخ ایمنی به کانالهای +Ca2 را آغاز کند. منشأ این امر هرچه که باشد، اتصال آنتیبادیها به کانالهای +Ca2 توانایی این کانالها را در حمل جریان +Ca2 کاهش میدهد. این نقص ناشی از آنتیبادی در ورود +Ca2 پیشسیناپسی است که ضعف عضلانی مرتبط با LEMS را توضیح میدهد.
Congenital myasthenic syndromes are genetic disorders that, like LEMS, cause muscle weakness by affecting neuromuscular transmission. Several congenital myasthenic syndromes also arise from defects in acetylcholine release from the motor neuron terminal. Neuromuscular synapses in some of these patients have EPPs with reduced quantal content, a deficit that is especially prominent when the synapse is activated repeatedly. Electron microscopy shows that presynaptic motor nerve terminals have a greatly reduced number of synaptic vesicles. The defect in neurotransmitter release evidently results from an inadequate number of synaptic vesicles available for release during sustained presynaptic activity. The origins of this shortage of synaptic vesicles is not clear, but could result either from an impairment in endocytosis in the nerve terminal (see Figure A) or from a reduced supply of vesicle components from the motor neuron cell body.
سندرمهای میاستنی مادرزادی، اختلالات ژنتیکی هستند که مانند LEMS، با تأثیر بر انتقال عصبی-عضلانی، باعث ضعف عضلانی میشوند. چندین سندرم میاستنی مادرزادی نیز از نقص در آزادسازی استیل کولین از پایانه نورون حرکتی ناشی میشوند. سیناپسهای عصبی-عضلانی در برخی از این بیماران دارای EPPهایی با محتوای کمی کاهشیافته هستند، نقصی که به ویژه هنگامی که سیناپس به طور مکرر فعال میشود، برجسته است. میکروسکوپ الکترونی نشان میدهد که پایانههای عصبی حرکتی پیشسیناپسی تعداد بسیار کمی وزیکول سیناپسی دارند. نقص در آزادسازی انتقالدهنده عصبی ظاهراً ناشی از تعداد ناکافی وزیکولهای سیناپسی موجود برای آزادسازی در طول فعالیت پیشسیناپسی پایدار است. منشأ این کمبود وزیکولهای سیناپسی مشخص نیست، اما میتواند ناشی از اختلال در اندوسیتوز در پایانه عصبی (شکل A را ببینید) یا از کاهش عرضه اجزای وزیکول از جسم سلولی نورون حرکتی باشد.
Still other patients suffering from familial infantile myasthenia appear to have neuromuscular weakness that arises from reductions in the size of individual quanta rather than the number of quanta released. Motor nerve terminals from these patients have synaptic vesicles that are typical in number but smaller than usual in diameter. This finding suggests a different type of genetic lesion that somehow alters formation of new synaptic vesicles following endocytosis, leading to less acetylcholine in each vesicle.
با این حال، به نظر میرسد سایر بیمارانی که از میاستنی مادرزادی خانوادگی رنج میبرند، ضعف عصبی-عضلانی دارند که ناشی از کاهش اندازه کوانتومهای منفرد است، نه تعداد کوانتومهای آزاد شده. پایانههای عصبی حرکتی این بیماران دارای وزیکولهای سیناپسی هستند که از نظر تعداد معمول اما از نظر قطر کوچکتر از حد معمول هستند. این یافته نشان دهنده نوع متفاوتی از ضایعه ژنتیکی است که به نوعی تشکیل وزیکولهای سیناپسی جدید را پس از اندوسیتوز تغییر میدهد و منجر به استیل کولین کمتر در هر وزیکول میشود.
Botulism and tetanus
Impairment of synaptic transmitter release also results from poisoning by anaerobic Clostridium bacteria. This genus of microorganisms produces some of the most potent toxins known, including several botulinum toxins and tetanus toxin. Both botulism and tetanus are potentially deadly disorders.
بوتولیسم و کزاز
اختلال در آزادسازی فرستنده سیناپسی همچنین ناشی از مسمومیت با باکتریهای بیهوازی کلستریدیوم است. این جنس از میکروارگانیسمها برخی از قویترین سموم شناخته شده، از جمله چندین سم بوتولینوم و سم کزاز را تولید میکنند. هم بوتولیسم و هم کزاز اختلالات بالقوه کشندهای هستند.
Botulism can occur by consuming food containing Clostridium bacteria, or by infection of wounds with the spores of these ubiquitous organisms. In either case, the presence of the toxin can cause paralysis of peripheral neuromuscular synapses due to impaired neurotransmitter release. This interference with neuromuscular transmission causes skeletal muscle weakness; in extreme cases respiratory failure results from paralysis of the diaphragm and other muscles required for breathing. Botulinum toxins also block synapses innervating the smooth muscles of several organs, giving rise to visceral motor dysfunction. This paralysis of neuromuscular transmission also serves as the basis for clinical use of botulinum toxin in cosmetic surgery and other applications where highly local relaxation of muscle contraction is of therapeutic benefit to the patient.
بوتولیسم میتواند با مصرف غذای حاوی باکتری کلستریدیوم یا با عفونت زخمها با اسپورهای این ارگانیسمهای فراگیر رخ دهد. در هر دو مورد، وجود سم میتواند به دلیل اختلال در آزادسازی انتقالدهندههای عصبی، باعث فلج سیناپسهای عصبی-عضلانی محیطی شود. این تداخل در انتقال عصبی-عضلانی باعث ضعف عضلات اسکلتی میشود. در موارد شدید، نارسایی تنفسی ناشی از فلج دیافراگم و سایر عضلات مورد نیاز برای تنفس است. سموم بوتولینوم همچنین سیناپسهایی را که عضلات صاف چندین اندام را عصبدهی میکنند، مسدود میکنند و باعث اختلال عملکرد حرکتی احشایی میشوند. این فلج انتقال عصبی-عضلانی همچنین به عنوان مبنایی برای استفاده بالینی از سم بوتولینوم در جراحی زیبایی و سایر کاربردهایی که در آنها شل شدن موضعی شدید انقباض عضلات برای بیمار مفید است، عمل میکند.
(A) Presynaptic targets of several neurological.
(الف) اهداف پیشسیناپسی چندین سیستم عصبی.
Tetanus typically results from the contamination of puncture wounds by Clostridium bacteria that produce tetanus toxin. In contrast to botulism, tetanus poisoning blocks the release of inhibitory transmitters from interneurons in the spinal cord. This effect causes a loss of synaptic inhibition on spinal motor neurons (see Chapter 16), producing hyperexcitation of skeletal muscle and tetanic contractions in affected muscles (hence the name of the disease).
کزاز معمولاً ناشی از آلودگی زخمهای سوراخ شده توسط باکتریهای کلستریدیوم است که سم کزاز تولید میکنند. برخلاف بوتولیسم، مسمومیت کزاز، آزادسازی فرستندههای مهاری از نورونهای رابط در نخاع را مسدود میکند. این اثر باعث از بین رفتن مهار سیناپسی در نورونهای حرکتی نخاعی میشود (به فصل 16 مراجعه کنید)، که باعث تحریک بیش از حد عضلات اسکلتی و انقباضات کزازی در عضلات آسیب دیده میشود (از این رو نام بیماری از همین جا آمده است).
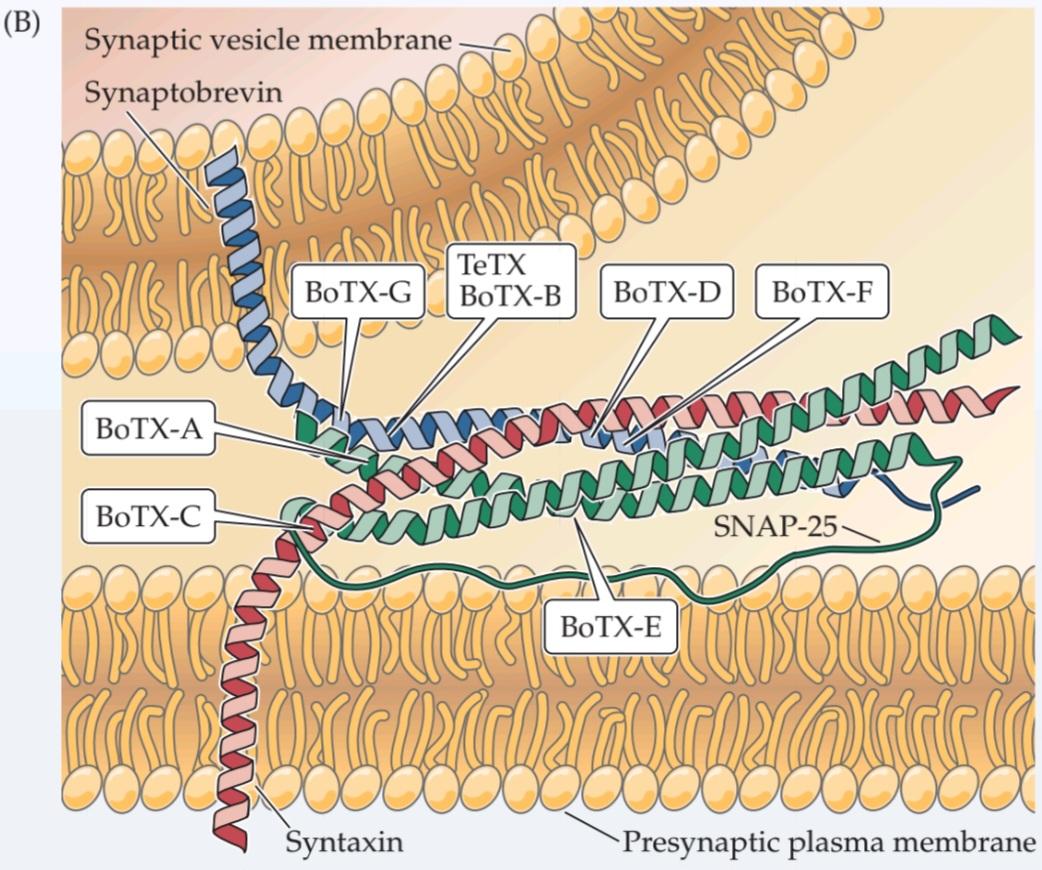
Although the clinical consequences of tetanus toxin are dramatically different from those of botulinum toxins, clever and patient biochemical work has shown that these toxins have a common mechanism of action: they are highly specific proteases that inhibit neurotransmitter release by cleaving the SNARE proteins involved in fusion of synaptic vesicles with the presynaptic plasma membrane (see Figure B). Tetanus toxin and botulinum toxin types B, D, F, and G specifically cleave the vesicle SNARE protein synaptobrevin. Other botulinum toxins cleave syntaxin (type C) and SNAP-25 (types A and E), SNARE proteins found on the presynaptic plasma membrane. Destruction of these presynaptic proteins is the basis for the inhibitory actions of clostridial toxins on neurotransmitter release.
اگرچه عواقب بالینی سم کزاز به طور چشمگیری با سموم بوتولینوم متفاوت است، اما کارهای بیوشیمیایی هوشمندانه و صبورانه نشان داده است که این سموم مکانیسم عمل مشترکی دارند: آنها پروتئازهای بسیار اختصاصی هستند که با تجزیه پروتئینهای SNARE که در ادغام وزیکولهای سیناپسی با غشای پلاسمایی پیشسیناپسی نقش دارند، آزادسازی انتقالدهنده عصبی را مهار میکنند (شکل B را ببینید). سم کزاز و انواع سم بوتولینوم B، D، F و G به طور خاص پروتئین سیناپتوبرووین وزیکول SNARE را تجزیه میکنند. سایر سموم بوتولینوم، سینتاکسین (نوع C) و SNAP-25 (انواع A و E) را تجزیه میکنند، پروتئینهای SNARE که در غشای پلاسمایی پیشسیناپسی یافت میشوند. تخریب این پروتئینهای پیشسیناپسی اساس اقدامات مهاری سموم کلستریدیایی بر آزادسازی انتقالدهندههای عصبی است.
The different actions of these toxins on synaptic transmission at excitatory motor versus inhibitory synapses apparently result from the fact that these toxins are taken up by different types of neurons: Whereas the botulinum toxins are tak-en up by motor neurons, tetanus toxin is preferentially targeted to interneurons. The differential uptake of toxins presumably arises from the presence of different types of toxin receptors on the two types of neurons.
عملکرد متفاوت این سموم بر انتقال سیناپسی در سیناپسهای حرکتی تحریکی در مقابل سیناپسهای مهاری ظاهراً ناشی از این واقعیت است که این سموم توسط انواع مختلفی از نورونها جذب میشوند: در حالی که سموم بوتولینوم توسط نورونهای حرکتی جذب میشوند، سم کزاز ترجیحاً به سمت نورونهای رابط هدف قرار میگیرد. جذب متفاوت سموم احتمالاً ناشی از وجود انواع مختلف گیرندههای سم بر روی دو نوع نورون است.
(B) Cleavage of SNARE proteins by clostridial toxins. Indicated are the sites of proteolysis by tetanus toxin (TeTX) and various types of botulinum toxin (BoTX). (From Sutton et al., 1998.)
(ب) تجزیه پروتئینهای SNARE توسط سموم کلستریدیومی. مکانهای پروتئولیز توسط سم کزاز (TeTX) و انواع مختلف سم بوتولینوم (BoTX) نشان داده شده است. (از ساتون و همکاران، ۱۹۹۸.)
Insights from α–latrotoxin
Latrodectism refers to the severe muscle pain and cramping experienced by patients bitten by the black widow spider, Latrodectus. These symptoms arise from the presynaptic neurotoxin a-latrotoxin, present in black widow spider venom; this toxin causes a massive discharge of neurotransmitter from presynaptic terminals. Although neurotransmitter release ordinarily requires Ca2+, a-latrotoxin is capable of releasing neurotransmitter even when Ca2+ is absent from the extracellular medium. Although it is not yet clear how the toxin triggers Ca2+-independent exocytosis, we know that a-latrotoxin binds to two different types of presynaptic proteins that may mediate its actions. One group of binding partners for a-latrotoxin is the neurexins, a group of integral membrane proteins found in presynaptic terminals. Neurexins bind to synaptotagmin, the presynaptic Ca2+ sensor, and this interaction may allow a-latrotoxin to bypass the usual Ca2+ requirement for triggering vesicle fusion. Another type of presynaptic protein that can bind to a-latrotoxin is called CL1 (based on its previous names, Ca2+-independent receptor for latrotoxin and latrophilin-1). CL1 is a relative of the G-protein-coupled receptors that mediate the actions of neurotransmitters and other extracellular chemical signals (see Figure 5.14B). Thus, the binding of a-latrotoxin to CL1 could activate an intracellular signal transduction cascade involved in the Ca2+-independent actions of a-latrotoxin. While more work is needed to establish the definitive roles of neurexins and CL1 in a-latrotoxin action, these two proteins are probably the basis for the toxin’s potent presynaptic activity.
بینشهایی از α-لاتروتوکسین
لاترودکتیسم به درد و گرفتگی شدید عضلانی اشاره دارد که بیمارانی که توسط عنکبوت بیوه سیاه، لاترودکتوس، گزیده شدهاند، تجربه میکنند. این علائم ناشی از نوروتوکسین پیشسیناپسی a-لاتروتوکسین، موجود در زهر عنکبوت بیوه سیاه، است. این سم باعث تخلیه گسترده انتقالدهنده عصبی از پایانههای پیشسیناپسی میشود. اگرچه آزادسازی انتقالدهنده عصبی معمولاً به +Ca2 نیاز دارد، a-لاتروتوکسین قادر به آزادسازی انتقالدهنده عصبی حتی در غیاب +Ca2 در محیط خارج سلولی است. اگرچه هنوز مشخص نیست که چگونه این سم باعث اگزوسیتوز مستقل از +Ca2 میشود، اما میدانیم که a-لاتروتوکسین به دو نوع مختلف از پروتئینهای پیشسیناپسی متصل میشود که ممکن است واسطه اعمال آن باشند. یک گروه از شرکای اتصال برای a-لاتروتوکسین، نورکسینها هستند، گروهی از پروتئینهای غشایی جداییناپذیر که در پایانههای پیشسیناپسی یافت میشوند. نورکسینها به سیناپتوتاگمین، حسگر +Ca2 پیشسیناپسی، متصل میشوند و این تعامل ممکن است به a-لاتروتوکسین اجازه دهد تا از نیاز معمول +Ca2 برای شروع ادغام وزیکولها عبور کند. نوع دیگری از پروتئین پیشسیناپسی که میتواند به a-لاتروتوکسین متصل شود، CL1 نامیده میشود (براساس نامهای قبلی آن، گیرنده مستقل از +Ca2 برای لاتروتوکسین و لاتروفیلین-1). CL1 از خویشاوندان گیرندههای جفتشده با پروتئین G است که واسطه اعمال انتقالدهندههای عصبی و سایر سیگنالهای شیمیایی خارج سلولی هستند (شکل 5.14B را ببینید). بنابراین، اتصال a-لاتروتوکسین به CL1 میتواند یک آبشار انتقال سیگنال درون سلولی را فعال کند که در اعمال مستقل از +Ca2 آلفا-لاتروتوکسین دخیل است. در حالی که برای تعیین نقشهای قطعی نورکسینها و CL1 در عملکرد آلفا-لاتروتوکسین، کار بیشتری لازم است، این دو پروتئین احتمالاً اساس فعالیت قوی پیشسیناپسی این سم هستند.
In addition to their possible role in latrodectism, neurexins have been linked variety of cognitive disorders. Mutations in the neurexin gene have been identified in several patients suffering from schizophrenia, a psychiatric disease causing delusions, hallucinations, and loss of emotional expression (see Box 18B). Neurexins are known to play an important role in signaling across the synaptic cleft by binding to a family of postsynaptic membrane proteins called neuroligins. Remarkably, mutations in neuroligins also have been associated with autism, a spectrum of psychiatric disorders characterized by impaired social interaction, communication problems, and other behavioral disorders. While a direct connection between neurexins or neuroligins and these psychiatric disorders has not yet been established, it seems likely that defects in these transsynaptic signaling partners may serve as a central mechanism underlying several psychiatric disorders.
علاوه بر نقش احتمالی آنها در لاترودکتیسم، نورکسینها با انواع اختلالات شناختی مرتبط بودهاند. جهش در ژن نورکسین در چندین بیمار مبتلا به اسکیزوفرنی، یک بیماری روانی که باعث توهم، هذیان و از دست دادن بیان عاطفی میشود، شناسایی شده است (به کادر 18B مراجعه کنید). نورکسینها با اتصال به خانوادهای از پروتئینهای غشای پس سیناپسی به نام نورولیگینها، نقش مهمی در سیگنالدهی در شکاف سیناپسی ایفا میکنند. نکته قابل توجه این است که جهش در نورولیگینها همچنین با اوتیسم، طیفی از اختلالات روانی که با اختلال در تعامل اجتماعی، مشکلات ارتباطی و سایر اختلالات رفتاری مشخص میشوند، مرتبط بوده است. در حالی که هنوز ارتباط مستقیمی بین نورکسینها یا نورولیگینها و این اختلالات روانی برقرار نشده است، به نظر میرسد که نقص در این شرکای سیگنالدهی ترانس سیناپسی ممکن است به عنوان یک مکانیسم مرکزی زیربنایی چندین اختلال روانی عمل کند.
In summary, not only does research into synaptic vesicle trafficking illuminate the causes of numerous neurological and psychiatric disorders, but research into these diseases in turn has provided tools—such as clostridial toxins and a-latrotoxin—that have proven valuable in elucidating the basic mechanisms of synaptic vesicle trafficking.
به طور خلاصه، تحقیقات در مورد جابجایی وزیکولهای سیناپسی نه تنها علل اختلالات عصبی و روانی متعددی را روشن میکند، بلکه تحقیقات در مورد این بیماریها به نوبه خود ابزارهایی – مانند سموم کلستریدیال و آلفا-لاتروتوکسین – را فراهم کرده است که در روشن شدن مکانیسمهای اساسی جابجایی وزیکولهای سیناپسی ارزشمند بودهاند.
Neurotransmitter Receptors
🚀 با ما همراه شوید!
تازهترین مطالب و آموزشهای مغز و اعصاب را از دست ندهید. با فالو کردن کانال تلگرام آیندهنگاران مغز، از ما حمایت کنید!